你的DNA正为八个字母屏住呼吸
大肠杆菌RNA聚合酶能以接近天然的水平忠实转录八碱基合成遗传字母表。这项发表于《自然》的突破性研究,为扩展遗传编码技术扫清了最后一道关键机制障碍。
四字母遗传密码即将迎来扩充。
地球上的生命一直依赖四种遗传碱基运行:腺嘌呤、胸腺嘧啶、胞嘧啶和鸟嘌呤。几十年来,合成生物学家一直在追问:这一数字是自然界的铁律,还是历史偶然?今年发表于《自然》杂志的一项研究表明,通向八字母系统的道路上,至少有一步已经完全可行。大肠杆菌 RNA聚合酶在转录过程中读取合成的P:Z碱基对,其效率和保真度几乎与自然碱基配对无可区分。
这一发现并非渐进式的改进。它填补了自AEGIS项目首次在试管中展示扩展遗传密码以来一直悬而未决的特定机制空白。此前,B:S非天然碱基对已在大肠杆菌 RNA聚合酶中得到表征,且P:Z和B:S均能在Taq DNA聚合酶和T7 RNA聚合酶等简单系统中工作。然而,多亚基细胞聚合酶——真正在活细胞中驱动转录的那一类——从未被证明能够处理P:Z。这很重要,因为B:S和P:Z共同构成了八字母"八文字"系统的核心。让其中一对在大肠杆菌中发挥作用是进步,但让两对共存而互不干扰才是真正的挑战。
实验是如何进行的
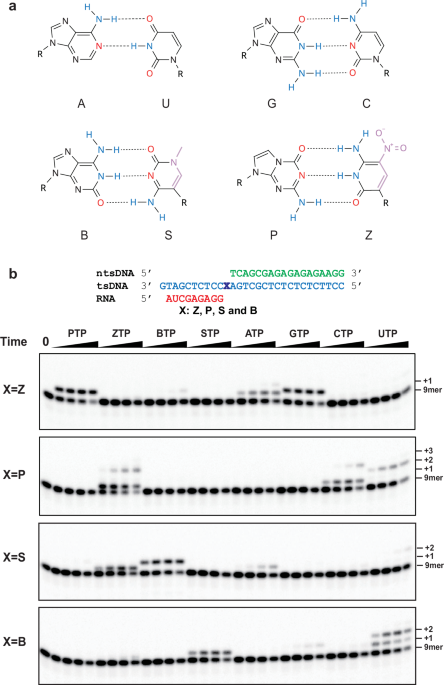
研究人员组装了带有单个非天然碱基位于+1模板位点的DNA/RNA杂合支架,并测试了所有八种核苷三磷酸——四种天然和四种合成——被大肠杆菌 RNA聚合酶掺入的情况。结果毫不含糊:在每一个测试时间点,正确配对都占据绝对优势。与dZ相对的PTP以及与dP相对的ZTP在15秒内就产生了清晰的延伸条带。单次周转动力学显示,dZ:PTP和dP:ZTP的观测速率常数约为天然dG:CTP对的一半。这确实偏慢,但远未达到功能丧失的程度。
更重要的是,这两对非天然碱基是正交的。当B:S和P:Z同时存在于同一转录反应中时,每一对各自选择自己的配对伙伴,基本忽略对方。正是这种正交性使得八字母系统在信息上是自洽的,而不仅仅是化学多样性而已。没有它,额外的字母就会坍缩为噪声。
错配问题与化学修正
任何扩展密码都不可避免地附带问题,而P:Z对就有一个显著的麻烦。Z核苷酸的 majorside沟中携带一个硝基。硝基是吸电子基团,它将核苷碱基的pKa降至约7.8,这意味着一部分Z分子在生理条件下会去质子化。去质子化形式Z⁻呈现出的氢键模式与鸟嘌呤相匹配。换句话说,Z可以与G错配——而转录实验恰好观测到了这一点。在所有32种模板-NTP组合中,dZ:GTP错配掺入是保真度破坏最严重的一项。
这不是大肠杆菌 RNA聚合酶的特有问题。同样的Z:G错配也已在Taq聚合酶介导的PCR以及早期的复制研究中被记录。这是化学本身的固有性质,而非蛋白质-核酸识别错误。其实际后果是:任何建立在P:Z之上的系统都必须应对G的错误插入,除非pKa被推至远高于中性水平。
作者通过一种称为Z的修饰核苷酸解决了这个问题。通过将硝基替换为羧酰胺并引入2′-氟取代基,他们将pKa提升至10以上。在生理pH下,去质子化几乎可以忽略不计,错配信号随之消减。使用dZ模板的转录实验显示GTP错配掺入大幅减少,单核苷酸延伸清晰干净。ZTP自身在不同模板背景下也比ZTP少得多地发生错配掺入。代价是Z是一种需要新建生物合成途径的新化学实体,但保真度的提升足以证明这项投入值得。
结构揭示了什么
分辨率为2.42埃的冷冻电镜结构捕捉到了大肠杆菌 RNA聚合酶在与dZ配对的PTP进入时的预催化状态。触发环——β’亚基中的一种可动元件,在正确底物结合时会折叠进入活性中心——完全被激活。触发环上的关键残基M932和H936,以及桥螺旋上的T790,通过疏水相互作用和氢键稳定了这对非天然碱基。活性中心内的P:Z对几何构型符合经典的沃森-克里克配对。三磷酸采取预期的椅式构象,由两个催化镁离子以标准的二金属离子排列协调。
用通俗的话来说,聚合酶无法分辨P和Z是外来物质。它以对待A:T和G:C的同样方式容纳它们。这就是这项结构研究的核心结论。这也意味着酶在掺入非天然碱基对后不会停滞或暂停。NTP冲刷实验显示,聚合酶能够高效地越过P:Z位点继续延伸,在下个位置没有可观测的停滞。
谁受益,谁受损
直接的受益者是从事扩展遗传信息系统研究的合成生物学家。AEGIS项目多年来一直在构建正交碱基对、聚合酶和核苷 salvage 途径。B:S对清除了最初几道障碍;这项工作确认了第二关的通过。B:S和P:Z共同支持了在细胞聚合酶背景下完整的八字母转录系统。下一步——让该系统在活体生物中跨越多轮复制和转录循环发挥作用——仍未解决,但机制上的不确定性已大幅缩减。
生物技术行业同样应当关注。八字母密码意味着每条核酸链的信息密度呈指数级增长。每个额外字母都扩大了编码容量。这转化为更复杂的适配体、更多样的寡核苷酸药物,以及可能超越20种天然氨基酸的新类别编码蛋白。构建合成基因电路或高密度数据存储介质的公司将在此处看到令人鼓舞的保真度数据。
如果有所谓的输家,那就是那些原本认为多亚基RNAP会比单亚基酶更难逾越的怀疑论者。事实并非如此。只要几何构型和氢键得以保持——正如AEGIS碱基对所满足的那样——触发环机制具有惊人的宽容性。
下一步会发生什么
近期内有三个问题主导着研究方向。第一,大肠杆菌能否内源性摄取并再生全部八种NTP?当前系统依赖于外源供应或仅对个别碱基对有效的工程salvage途径。完整的八字母代谢尚未得到演示。第二,翻译会如何变化?B:S对已被用于在体外扩展氨基酸词汇表,但将八字母转录与八字母翻译偶联于单一生物体中仍属假设。第三,长转录本中的错误率如何?单核苷酸实验很干净,但含多个非天然碱基的全长mRNA生产会引入累积错配风险,而本研究所涉未深。
此外还有一项值得注意的隐含意义。Z*修饰证明,扩展密码的保真度问题往往是化学性质的,而非酶学性质的。微小的结构改变——用羧酰胺替换硝基、用氟原子替换氢原子——就能解决错配,无需开发新聚合酶或进行新的蛋白质工程。这将瓶颈从蛋白质进化转向有机合成,对大多数实验室而言是可更易驾驭的问题。
更广泛的含义同样具体。对于地外生命的搜寻,这项工作强化了这样一个观点:四字母遗传系统并非受到物理或化学的独特限制。其他地方的生命完全有可能使用不同大小的密码字母表。大肠杆菌 RNA聚合酶能够以接近天然几何的方式容纳合成碱基,意味着分子层面的大门已经打开。而其他地方生命是否选择跨过这道门,则是另一个截然不同的问题了。
而目前,这项研究传递的信息直截了当。大肠杆菌 RNA聚合酶能够转录八字母遗传密码。其机制熟悉,保真度足够且可进一步提升。下一道障碍,已不再是聚合酶本身。